Integration von Tomographiedaten mit molekularbiologischen Methoden in der Zellforschung
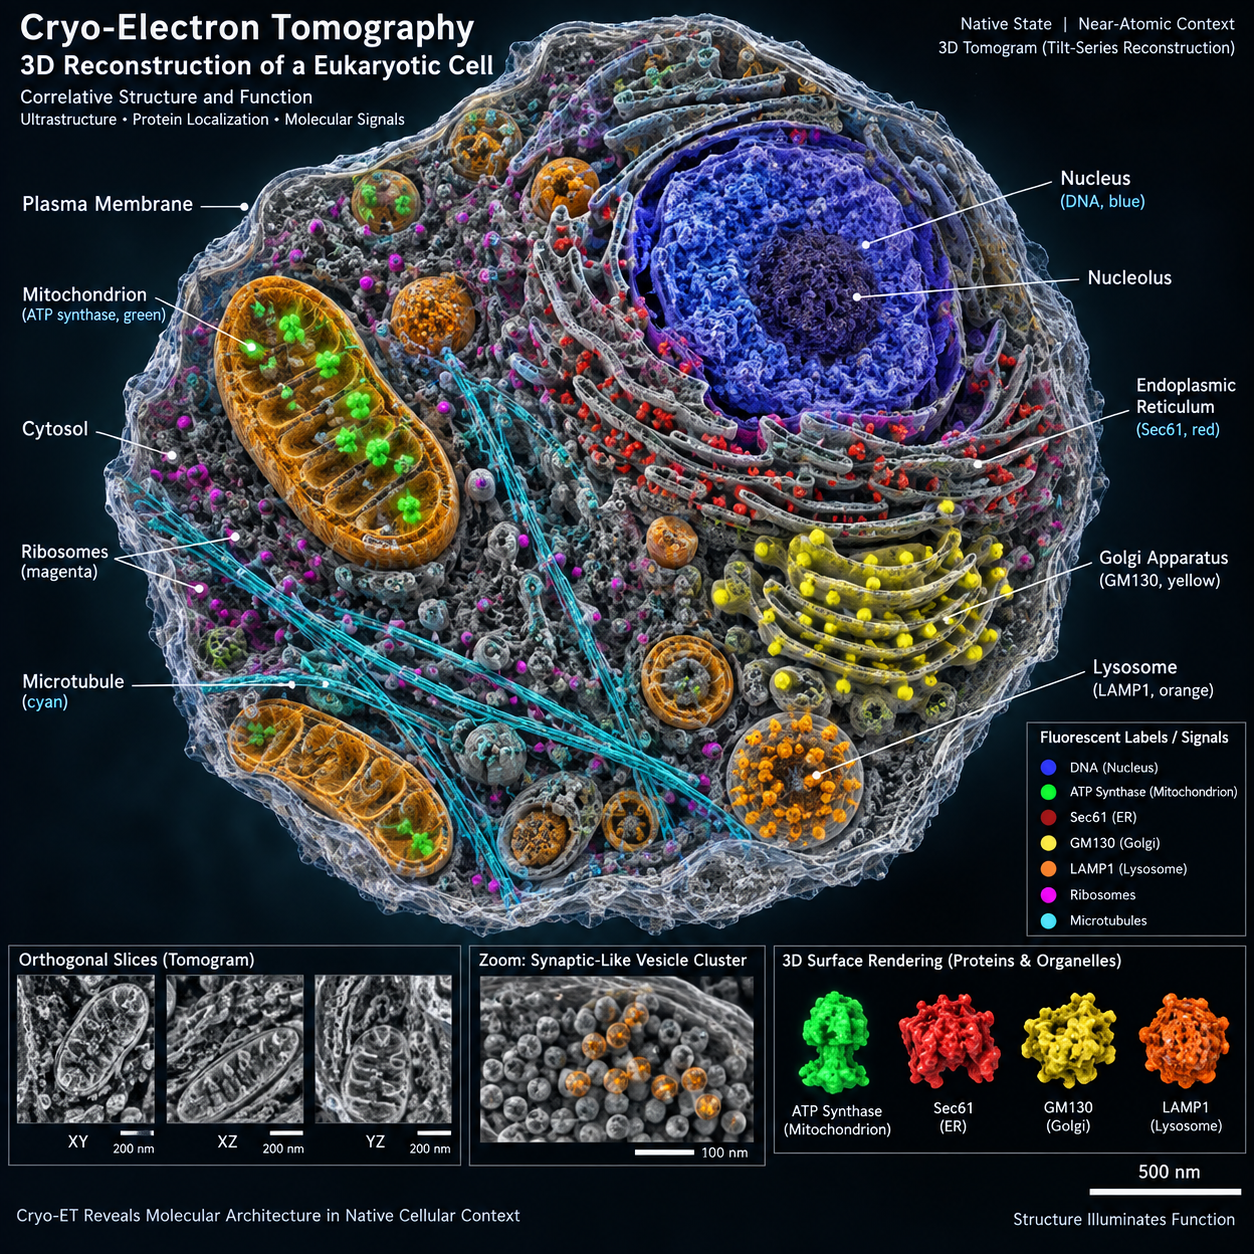
Die Zelltomographie zeigt, wie Zellbestandteile im dreidimensionalen Raum angeordnet sind. Molekularbiologische Verfahren ergänzen diese Bilder um Hinweise darauf, welche Proteine, Nukleinsäuren oder Genexpressionszustände beteiligt sind. Werden beide Datentypen sorgfältig korreliert, lassen sich molekulare Befunde in ihrer zellulären Ultrastruktur verorten.
Warum Tomographie und Molekularbiologie kombinieren?
Die Kombination aus Tomographie und Molekularbiologie verbindet räumliche Strukturinformation mit molekularer Identität. So kann die Analyse zeigen, wo sich ein Signal in einer Zelle befindet und in welchem strukturellen Zusammenhang es auftritt.
Ein molekularer Messwert allein verrät oft wenig über den Ort eines Vorgangs. Genexpression kann beispielsweise anzeigen, dass eine Zelle ein bestimmtes Protein bildet; sie sagt jedoch nicht unmittelbar, ob dieses Protein an einer Membran, in einem Organell oder an einem Kontakt zwischen Zellkompartimenten aktiv ist. Umgekehrt macht eine 3D-Rekonstruktion feine Strukturen sichtbar, identifiziert aber nicht automatisch ihre molekularen Bestandteile.
Die Integration schließt diese Lücke. Bei der Kryo-Elektronentomographie (Kryo-ET) werden geneigte elektronenmikroskopische Aufnahmen einer vitrifizierten Probe zu einem dreidimensionalen Volumen rekonstruiert. Werden dazu passende molekulare Signale erfasst, können Forschende Ultrastruktur und Molekülverteilung gemeinsam beurteilen. Das ist besonders hilfreich, wenn ein Protein nur in einem bestimmten zellulären Kontext seine Funktion entfaltet.
Welche Methoden lassen sich verbinden?
Mit Tomographiedaten lassen sich vor allem Verfahren verbinden, die molekulare Ziele markieren oder deren Häufigkeit und Aktivität messen. Welche Kombination sinnvoll ist, hängt davon ab, ob die Forschungsfrage den Ort eines Moleküls, seine Menge oder seine Funktion betrifft.
Korrelative Mikroskopie verknüpft Bilder desselben Probenbereichs, die mit unterschiedlichen Mikroskopieverfahren aufgenommen wurden. Häufig wird zunächst Fluoreszenzmikroskopie eingesetzt, um ein Zielprotein oder ein Zellkompartiment zu lokalisieren; anschließend untersucht die Elektronenmikroskopie die entsprechende Region mit höherer struktureller Detailtiefe. Bei der korrelativen Licht- und Elektronenmikroskopie (CLEM) müssen die Signale über gemeinsame Landmarken oder ein Koordinatensystem aufeinander bezogen werden.
Weitere molekulare Ergänzungen sind:
- Immunmarkierung: Antikörper oder andere Bindungspartner kennzeichnen ausgewählte Proteine. Goldpartikel können das Ziel in elektronenmikroskopischen Aufnahmen sichtbar machen, während Fluorophore die Lokalisierung im Lichtmikroskop unterstützen.
- Genexpression: Transkriptomische Messungen liefern Informationen darüber, welche Gene in einer Probe aktiv sind. Sie beschreiben meist Zellpopulationen oder Zustände und benötigen zusätzliche räumliche Daten, wenn einzelne Transkripte in der Ultrastruktur verortet werden sollen.
- Proteomik: Massenspektrometrische Analysen erfassen Proteinmengen und Zusammensetzung, oft in einer Zellpopulation oder angereicherten Fraktion. Sie ergänzen die Bildgebung, weisen ein Protein aber nicht automatisch einer konkreten Position in einer Tomographie zu.
Diese Methoden sind nicht austauschbar: Fluoreszenz eignet sich für die gezielte Lokalisierung, Immunmarkierung für die Identifizierung ausgewählter Ziele und Omics-Verfahren für einen breiteren molekularen Überblick. Jede zusätzliche Methode erhöht zugleich Anforderungen an Probenkompatibilität und Auswertung.
Vom Probenmaterial zur integrierten Analyse
Ein korrelativer Workflow beginnt mit der Forschungsfrage und endet mit der überprüften Zuordnung molekularer Signale zur 3D-Struktur. Entscheidend ist, die Probenvorbereitung so zu planen, dass beide Messverfahren relevante Merkmale erhalten.
In der Kryo-ET werden Zellen oder Zellbereiche rasch vitrifiziert, damit ihre Strukturen möglichst nahe am nativen Zustand erhalten bleiben. Fluoreszenzmarkierung, Fixierung oder chemische Behandlung können jedoch die Probe verändern oder mit der Kryopräparation kollidieren. Deshalb sollte das Team vorab klären, ob dieselbe Probe nacheinander untersucht werden kann oder ob parallele Proben nötig sind.
- Ziel und Maßstab festlegen: Bestimmen, welches Molekül gesucht wird und ob die Frage einzelne Zellbereiche, Organellen oder eine Zellpopulation betrifft.
- Probe vorbereiten und markieren: Ein geeignetes Markierungssystem wählen und Kontrollproben ohne Primärantikörper, ohne Fluorophor oder mit bekanntem Signal einplanen.
- Signale erfassen: Fluoreszenzbilder und elektronenmikroskopische Daten mit dokumentierten Koordinaten und wiedererkennbaren Landmarken aufnehmen.
- Tomogramm rekonstruieren und korrelieren: Aus den Elektronenbildern eine 3D-Rekonstruktion erstellen, die Datensätze registrieren und die Zuordnung anhand der Probenmerkmale prüfen.
Frühe Pilotversuche sparen oft Zeit: Sie zeigen, ob Signalstärke, räumliche Abdeckung und Erhalt der Ultrastruktur für die geplante Korrelation ausreichen. Ein starkes Fluoreszenzsignal ist dabei kein Beleg für eine präzise molekulare Lokalisierung im Tomogramm.
Daten räumlich und molekular zusammenführen
Um Tomographiedaten räumlich und molekular zusammenzuführen, werden die Bilddatensätze registriert und molekulare Signale einer Position oder Struktur im rekonstruierten Volumen zugeordnet. Die Genauigkeit dieser Zuordnung hängt von Landmarken, Auflösung und Messfehlern ab.
Bei der Registrierung werden gemeinsame Merkmale wie Zellränder, Organellen oder eingebrachte fiduzielle Marker genutzt, um die Koordinatensysteme der Aufnahmen anzugleichen. Anschließend lässt sich ein Fluoreszenzsignal auf eine Region im Tomogramm übertragen oder eine Immunmarkierung einer sichtbaren Struktur zuordnen. Für eine belastbare Interpretation sollte die Registrierung nicht nur visuell plausibel wirken: Abweichungen und mögliche Verzerrungen müssen berücksichtigt werden.
Praktisch hilft eine Konfidenzkette: Erstens wird geprüft, ob das molekulare Signal spezifisch ist. Zweitens wird kontrolliert, ob die Landmarken eine zuverlässige Registrierung erlauben. Drittens wird gefragt, ob die räumliche Genauigkeit zur Größe der untersuchten Struktur passt. Ein Signal nahe einer Membran kann etwa eine Membranassoziation stützen, aber bei zu grober Auflösung keine direkte Bindung an ein bestimmtes Membranprotein belegen.
Eine 3D-Rekonstruktion liefert somit den räumlichen Rahmen für die Interpretation, nicht automatisch den molekularen Beweis. Aussagen sollten den tatsächlichen Maßstab der Daten widerspiegeln.
Erkenntnisgewinn in der Zellforschung
Die integrierte Analyse hilft, Proteine und molekulare Prozesse in ihrer zellulären Ultrastruktur zu untersuchen. Sie ist besonders nützlich, wenn die Funktion eines Moleküls von seinem genauen Ort oder von der Organisation benachbarter Strukturen abhängt.
Forschende können beispielsweise untersuchen, wie Proteinkomplexe an Membranen angeordnet sind, wo Vesikel mit Organellen in Kontakt treten oder wie sich Zellstrukturen während einer Infektion verändern. Auch die Beziehung zwischen Genexpressionszuständen und Zellarchitektur lässt sich gezielter prüfen, wenn molekulare Profile mit räumlich aufgelösten Beobachtungen aus passenden Proben verknüpft werden.
Der Mehrwert liegt oft im Zusammenspiel: Die Tomographie liefert Kontext, Immunmarkierung oder Fluoreszenz weist auf ein Ziel hin, und Proteomik oder Genexpression beschreibt den breiteren molekularen Zustand. Eine solche Kombination kann Hypothesen schärfen und Kandidaten für weitere Experimente priorisieren. Sie ersetzt jedoch keine funktionellen Tests, wenn es darum geht, eine Ursache-Wirkungs-Beziehung zu belegen.
Herausforderungen und Grenzen
Die Integration verschiedener Datentypen ist durch Auflösung, Probenkompatibilität, Markierungsartefakte und Registrierungsfehler begrenzt. Die Ergebnisse sind daher am stärksten, wenn jede Zuordnung durch Kontrollen gestützt wird.
Fluoreszenzmikroskopie und Kryo-ET arbeiten mit unterschiedlichen Kontrasten und räumlichen Maßstäben. Ein Fluoreszenzsignal kann einen Bereich markieren, der größer ist als die ultrastrukturelle Zielregion. Auch Antikörper und Markierungspartikel besitzen eine eigene Größe und können die genaue Position des Epitops verschieben oder den Zugang zu einem Ziel behindern.
Weitere Grenzen entstehen durch Probenverarbeitung: Fixierung, Dehydratisierung oder andere Präparationsschritte können Strukturen verändern; nicht jede Methode lässt sich mit vitrifizierter Probe kombinieren. Bei Genexpression und Proteomik kommt hinzu, dass Messungen häufig Informationen aus vielen Zellen mitteln. Daraus folgt nicht automatisch, welches einzelne Molekül in einem bestimmten Tomogramm sichtbar ist.
Häufige Fehlannahmen lassen sich vermeiden:
- Signal gleich Identität setzen: Ein sichtbares Signal beweist keine Spezifität. Antikörperkontrollen und unabhängige Nachweise einplanen.
- Registrierung als exakt behandeln: Jede Zuordnung hat eine Unsicherheit. Diese dokumentieren und keine feinere Lokalisierung behaupten, als die Daten erlauben.
- Omics-Daten direkt auf Einzelzellen übertragen: Populationsdaten sind nicht automatisch zellgenau. Dafür sind räumlich aufgelöste oder gezielt angereicherte Messungen erforderlich.
Praktische Überlegungen für die Methodenwahl
Die passende Methodenwahl richtet sich nach der Forschungsfrage, dem verfügbaren Probenmaterial und der benötigten räumlichen Genauigkeit. Beginnen Sie mit der Information, die am Ende belegt werden muss, und wählen Sie erst danach die Kombination aus Tomographie und Molekularbiologie.
Geht es um die Lage eines bekannten Proteins in einer Zellstruktur, kann korrelative Fluoreszenzmikroskopie mit gezielter Immunmarkierung sinnvoll sein. Soll die molekulare Zusammensetzung einer Zellpopulation umfassender beschrieben werden, bieten sich Proteomik oder Genexpressionsanalyse als Ergänzung an; die räumliche Verknüpfung muss dann gesondert geplant werden. Für native, hochaufgelöste Zellarchitektur ist Kryo-ET attraktiv, sofern Zelltyp, Probendicke und Instrumentierung dafür geeignet sind.
Vor der Entscheidung sollten vier Punkte geklärt sein: Ist das Zielmolekül zuverlässig markierbar? Bleibt die Ultrastruktur durch den Workflow erhalten? Können dieselben Zellen in beiden Verfahren erfasst werden? Reicht die Genauigkeit der Korrelation für die geplante Aussage? Wenn eine Antwort unsicher ist, lohnt sich ein kleiner Machbarkeitstest, bevor umfangreiche Proben verarbeitet werden.
FAQ
Die folgenden Antworten fassen zentrale Begriffe und praktische Grenzen der korrelativen Analyse zusammen.
Was bedeutet korrelative Mikroskopie?
Korrelative Mikroskopie bezeichnet die Verknüpfung von Aufnahmen derselben Probe oder desselben Zellbereichs, die mit verschiedenen Mikroskopieverfahren entstanden sind. In der Zellforschung kombiniert sie häufig Fluoreszenzsignale mit der strukturellen Detailtiefe der Elektronenmikroskopie.
Welche molekularbiologischen Daten lassen sich mit Tomographie verknüpfen?
Verknüpft werden können unter anderem lokalisierte Fluoreszenzsignale, Immunmarkierungen, Genexpressionsdaten und Proteomik-Ergebnisse. Räumlich direkte Zuordnungen gelingen am ehesten mit bildgebenden Markierungen; Omics-Daten liefern meist ergänzende Informationen über Zellzustände oder Molekülmengen.
Wie werden molekulare Signale einer 3D-Struktur zugeordnet?
Die Datensätze werden über gemeinsame Landmarken registriert. Danach wird das Signal auf das Tomogramm übertragen und die Zuordnung anhand von Auflösung, Kontrollen und Registrierungsunsicherheit bewertet.
Welche Grenzen hat die Integration verschiedener Datentypen?
Begrenzend wirken unterschiedliche Auflösungen, Präparationsartefakte, unspezifische Markierungen und Fehler bei der Registrierung. Außerdem lassen sich Messwerte aus einer Zellpopulation nicht ohne Weiteres auf eine einzelne Zelle oder Struktur übertragen.